

FISCHLEX DOSSIER
Warum begradigte Flüsse Fische verlieren
Geradegezogene, befestigte Flüsse wirken effizient – doch sie nehmen Fischen Strömungsvielfalt, Kinderstuben, Nahrung und Wege. Was genau verloren geht und wie Flüsse es zurückbekommen.
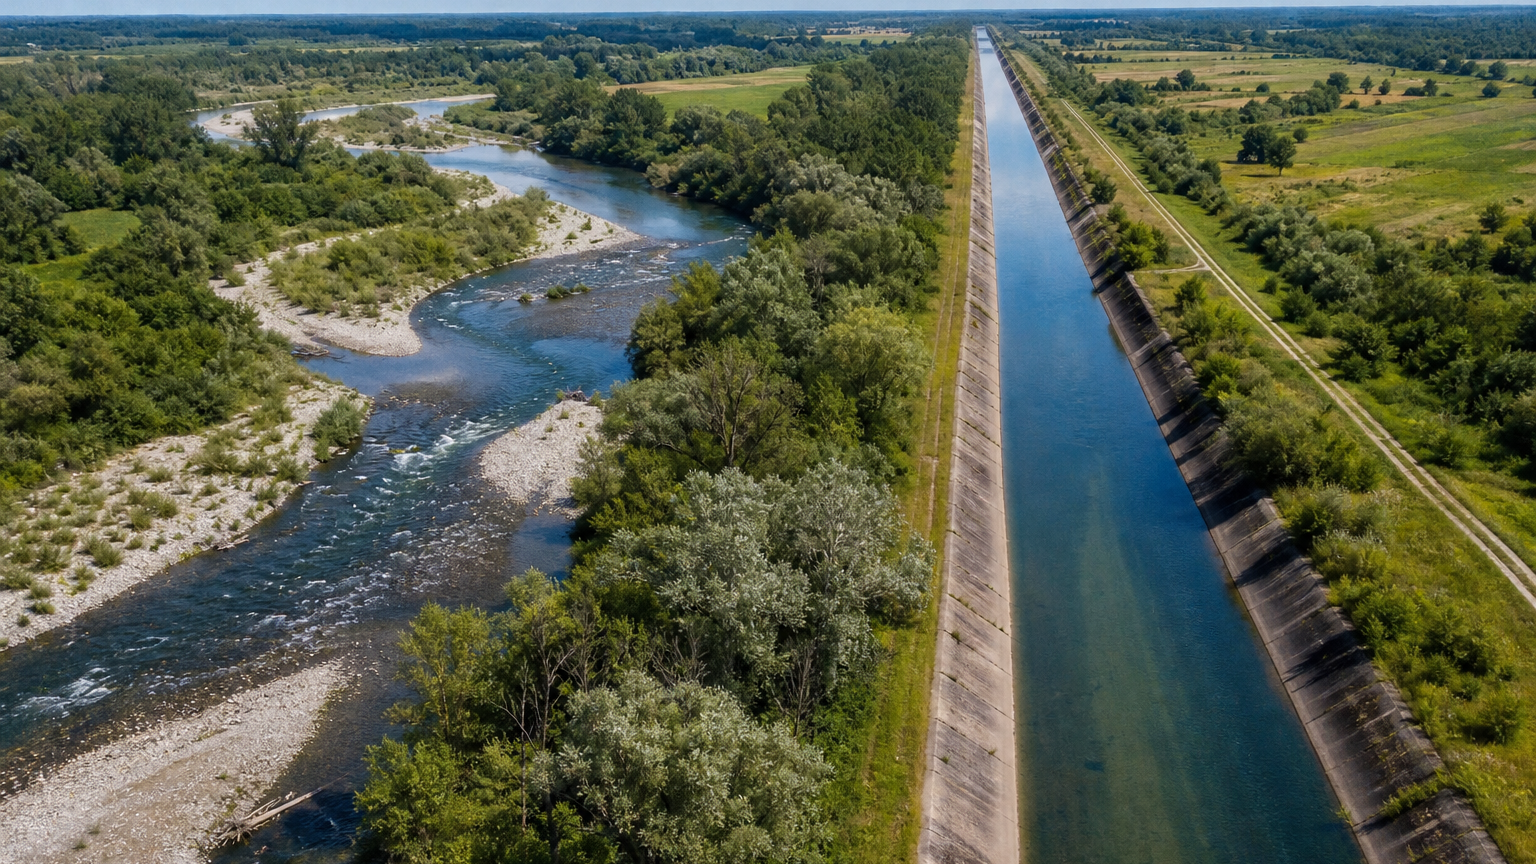
Über Jahrhunderte wurden Flüsse begradigt, vertieft und verbaut – für Schifffahrt, Landwirtschaft und Hochwasserschutz. Das machte Ströme berechenbarer, oft aber auch ärmer an Leben. Anglerinnen und Gewässerkundler beobachten: Wo der Verlauf schnurgerade wird, sinkt die Vielfalt der Fischgemeinschaft, sensible Arten verschwinden zuerst. Der Zusammenhang ist kein Zufall. Begradigungen verändern die hydraulische Energie des Wassers, die Gestalt des Flussbetts und die Anbindung an Auen. Damit verschieben sich Strömungsmuster, Sedimenttransport, Temperaturverlauf und Nahrungsnetze – Größen, auf die Fische mit ihrem gesamten Lebenszyklus angewiesen sind.
Die Leitfrage dieses Dossiers lautet: Warum verlieren Fische in begradigten Flüssen so konsequent an Lebensqualität – und lässt sich das umkehren? Die Antwort führt von grundlegender Flussdynamik über Kies- und Uferhabitate bis zu unscheinbaren Hindernissen in Durchlässen. Sie erklärt, weshalb glatte Ufer und schnelles Wasser ein scheinbar technisches Problem in eine ökologische Kaskade verwandeln und weshalb erfolgreiche Renaturierungen nicht mit Dekoration beginnen, sondern mit Raum und Dynamik. Zugleich gilt: Flüsse sind unterschiedlich. Nicht jede Maßnahme wirkt überall gleich, und manches, was für eine Art hilft, verschlechtert die Lage für eine andere. Doch es gibt robuste Prinzipien, die zeigen, wann aus einer beschleunigten Rinne wieder ein funktionierender Fluss wird – und wann Fische bleiben.
Gerader Fluss, leeres Netz
Beobachtung und Mechanismus: Wenn Flüsse schnurgerade werden, geraten Lebenszyklen von Fischen aus dem Takt.
Wo Flüsse begradigt und Ufer hart befestigt sind, verändert sich mehr als die Linie auf der Karte. Der Fluss verliert Kurven, Nebengerinne, Kolke, Kiesbänke und auennahen Schatten – also jene Vielfalt, die Fischen unterschiedliche Strömungen, Tiefen und Verstecke bietet. Für viele Beobachter wirkt die Strecke aufgeräumt, für Fische ist sie karg. Typische Folgen sind geringere Artenzahlen, kleinere Individuen und Gemeinschaften, in denen robuste Generalisten die früheren Leitarten verdrängen.
Das hat eine physikalische Ursache. Verkürzt man einen Flusslauf, steigt sein Gefälle pro Kilometer; der Abfluss wird schneller, gleichförmiger, das Bett tiefer in die Landschaft eingeschnitten. Was an Struktur nicht mehr entsteht – weil Kurven fehlen und die Aue kaum überflutet wird –, muss künstlich eingebaut werden. Doch Steinschüttungen und glatte Böschungen liefern kaum Ersatz für dynamische Habitate, die sich aus natürlicher Erosion und Ablagerung ständig erneuern.
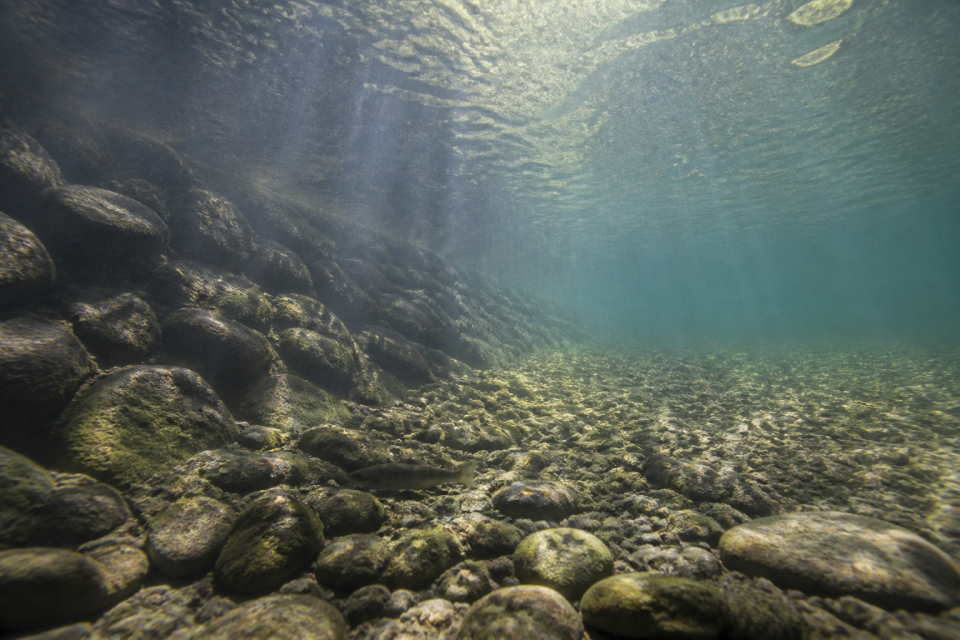
Flussökologie ist vierdimensional gedacht: längs, quer, vertikal und zeitlich. Begradigungen schränken alle vier Verbindungen ein. Längs fehlen Ruheinseln und Futterhotspots, quer ist die Aue abgehängt, vertikal trocknet der Austausch mit dem Kieskörper aus, zeitlich wird der jahreszeitliche Abfluss geglättet. Zusammen ergibt das einen Lebensraum, in dem Fische mehr Energie zum Schwimmen aufbringen und weniger Orte für Laich, Aufwuchs und Nahrung finden.
Konsequent ist auch der energetische Befund: In einer hydraulisch vereinheitlichten Rinne wird Schwimmen zur Dauerleistung, weil kaum Grenzschichtbereiche, Kehrwasserkanten oder strömungsarme Taschen existieren, in denen Fische Kraft sparen. Je weniger Mikrohabitate ein Abschnitt bietet, desto geringer die Chance, dass Individuen situativ das passende Milieu finden – kühler im Sommer, ruhiger bei Hochwasser, sauerstoffreich in der Nacht. Dieser Mangel an Optionen erklärt, warum scheinbar geringe Eingriffe in der Summe zu spürbaren Einbußen bei Wachstum, Kondition und Nachwuchs führen.
Bezug: Ward 1989 The four-dimensional nature of lotic ecosystems · Poff et al. 1997 The natural flow regime · European Environment Agency 2018 European waters assessment
Wenn Strömung alles gleich macht
Begradigungen bündeln Energie, vertiefen das Bett und glätten Strukturen – mit direkten Folgen für Fischhabitate.
Hydraulisch betrachtet ist eine Begradigung eine Abkürzung: Gleicher Höhenunterschied auf kleinerer Länge erhöht das Gefälle. Wo gleichzeitig das Profil trapezförmig ausgebaut und die Ufer gepflastert werden, sinkt die Rauigkeit, und das Wasser beschleunigt noch weiter. Die Schubspannung am Grund steigt, feines Material wird ausgeräumt, bis grobe Steine oder eine gesicherte Sohle den Prozess stoppen. Das Ergebnis ist ein tiefer liegender, einförmiger Querschnitt mit wenig Nebengerinnen und kaum Untiefen.
Für Fische bedeutet das: weniger Orte mit strömungsberuhigten Zonen, weniger Kanten, Wirbel und Kehrwasser, die als Rastplätze oder Jagdkulissen dienen. Gleichförmige Strömung zwingt selbst mittelgroße Arten zu Dauerschwimmen. Der Energiebedarf steigt, Reserven für Wachstum und Fortpflanzung sinken. Arten, die auf Kolke, Rauschen und strukturierte Übergänge zwischen flachen und tiefen Bereichen angewiesen sind, verlieren unverhältnismäßig viel Habitat.
Werden Kurven entfernt, fehlen auch die Orte, an denen Flüsse von selbst Struktur bauen. In Mäandern entstehen Erosion am Prallhang und Ablagerung am Gleithang, Holz und Kies wandern, Inseln wachsen und verschwinden. Wo solche Prozesse unterbunden sind, muss Struktur technisch erzeugt und dauerhaft stabilisiert werden – doch Stabilität ist in Fließgewässern oft das Gegenteil von ökologischem Wert.
Hinzu kommen Verschiebungen im Geschiebetransport. Wenn oberhalb wenig Nachschub kommt, poliert das schnell fließende Wasser die Sohle bis zum sogenannten Armoring: eine verfestigte Grobkornhaut, unter der kaum Austausch mit dem Untergrund stattfindet. Lokale Sohlabstürze propagieren als Knickpunkte flussaufwärts, weshalb zur Sicherung häufig Querbauwerke eingebaut werden. Diese wiederum fixieren den Querschnitt und homogenisieren die Strömung zusätzlich. Was als technischer Schutz beginnt, verengt das Spektrum natürlicher Prozesse – und damit die Palette der Habitate, aus denen Fischgemeinschaften wählen können.
Was Begradigung im Fluss auslöst
- Lauf verkürztDer Höhenunterschied verteilt sich auf weniger Länge – das Gefälle steigt.
- Strömung beschleunigtGeringere Rauigkeit durch Ausbauprofile und Uferbefestigung erhöht die Fließgeschwindigkeit.
- Sohle vertieftHöhere Schubspannung räumt Feinsediment aus, das Bett schneidet sich ein.
- Aue abgehängtSelteneres Überschwemmen trennt den Fluss von seiner Kinderstube und seinem Speicherraum.
- Struktur verarmtWeniger Riffles, Kolke, Kiesbänke und Kehrwasser bedeuten weniger Mikrohabitate für Fische.
Bezug: Leopold, Wolman, Miller 1964 Fluvial Processes in Geomorphology · Poff et al. 2010 The ecological limits of hydrologic alteration ELOHA · Poff et al. 1997 The natural flow regime
Verlorene Kinderstuben
Ohne Kies, Kraut und ruhige Nebengerinne verlieren Fische Orte zum Laichen, Schlüpfen und Aufwachsen.
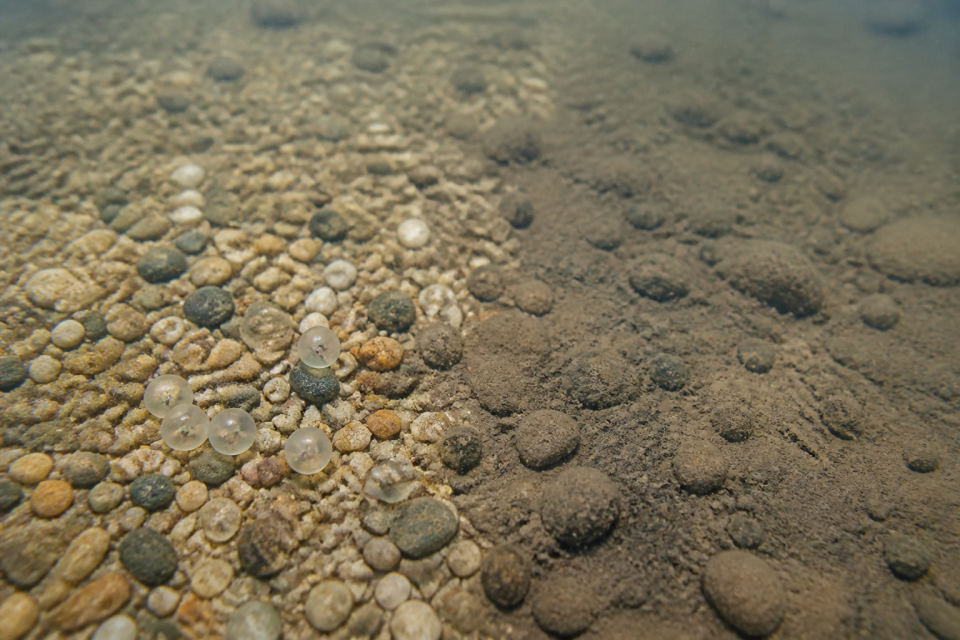
Viele heimische Arten sind kieslaichend: Sie legen Eier in lückigem Schotter ab, wo ein sanfter Grundwasserstrom Sauerstoff zuführt. In begradigten Strecken werden diese Lockerporen oft mit Feinsediment verstopft, das aus seitlich erodierenden Böschungen oder von Äckern eingetragen wird. Gleichzeitig fegt schnelle Strömung frei liegenden Kies weg. Zurück bleiben harte, verbackene Sohlbereiche oder monotone Pflasterungen – schlecht belüftete Brutplätze, an denen die Embryonen im Engpass der Sauerstoffversorgung scheitern.
Ebenso wichtig sind strömungsarme Räume mit Wasserpflanzen, die Schutz und Nahrung für Larven bieten. In natürlichen Flüssen entstehen solche Kinderstuben in überschwemmten Auenmulden, hinter Totholz oder in Nebengerinnen. Wenn der Fluss tief eingeschnitten ist und nur noch selten über die Ufer tritt, bleiben diese Flächen trocken. Der „flood pulse“ – das periodische Überfluten, das Auen belebt – fällt aus, und mit ihm die Jagdgründe vieler Jungfische.
Jungfische sind langsam, sie brauchen Deckung und Mikroklimata. In geraden Rinnen tragen uniforme Strömung und fehlendes Uferkraut dazu bei, dass Räuber leichter jagen. Gleichzeitig ist das Nahrungsangebot kleiner: Weniger Kraut und Totholz bedeutet weniger Insektenlarven, die in fein strukturierten Übergangszonen sonst massenhaft vorkommen.
Lebenszyklusstrategien sind vielfältig. Manche Arten kleben Eier an Pflanzen oder Hartsubstrate, andere setzen auf Freiwasserlaich oder laichen in flach überströmten Wiesen, sobald die Aue geflutet ist. Gemeinsam ist allen Strategien, dass sie Verlässlichkeit bestimmter Mikrobedingungen erfordern: Temperaturfenster für die Embryonalentwicklung, feine Strömungsgradienten, Sauerstoff im Porenwasser, Deckung für die ersten Wochen. Begradigte, monotone Abschnitte liefern dieses Mosaik kaum. Selbst wenn einzelne Laichakte gelingen, bleibt die Rekrutierung oft wechselhaft, weil Strömungsspitzen oder plötzliche Temperatursprünge ganze Kohorten treffen – und es keine Ausweichhabitate gibt, in die sich der Nachwuchs retten kann.
Bezug: Junk, Bayley, Sparks 1989 The flood pulse concept · Strayer and Dudgeon 2010 Freshwater biodiversity conservation · Roni, Beechie, Pess, Hanson 2013 Stream and Watershed Restoration
Weniger Kurven, weniger Beute
Glatte Kanäle halten wenig organisches Material zurück – Insektenproduktion und Futterhotspots brechen ein.
Mäander, Uferwurzeln und Totholz sind Fallen für Laub, Blüten und feinen Detritus. In den Wirbeln und Kehrwassern wachsen mikrobielle Filme und Algen, die die Basis der Nahrungskette bilden. Auf ihnen weiden Insektenlarven, die wiederum von Kleinfischen und Jungstadien gefressen werden. Dieser organische Rückhalt ist ein Motor der Produktivität – er braucht Rauigkeit und Zeit.
Begradigte Abschnitte verlieren beides. Glatte Steinschüttungen bieten wenig Haftgrund, die Strömung schwemmt organisches Material rasch ab. Selbst wenn Wasserqualität und Licht stimmen, fehlt die mechanische Struktur, die stehende Mikrohabitate schafft. Die Folge sind ärmere Benthosgemeinschaften, weniger Drift und weniger punktuelle Futteransammlungen, die Beutefische nutzen können.
Fische reagieren sensibel auf solche Veränderungen. Räuber wie Forellen oder Zander profitieren von Kanten, Kolken und Trübungsschwaden, in denen sie Energie sparen und effizient zuschlagen. In gleichförmigen Kanälen wird Nahrungssuche teurer und riskanter. Generalisten, die in der freien Wassersäule jagen oder ein breites Spektrum an Beute akzeptieren, bleiben eher, Spezialisten ziehen ab.
Neben der aquatischen Produktion spielen Land-Wasser-Verbindungen eine große Rolle. Überhängende Ufergehölze liefern im Sommer massenhaft terrestrische Insekten, die an der Oberfläche oder knapp darunter verfüttert werden. In begradigten, freigeschnittenen Korridoren fehlt diese Subvention; die Oberfläche bleibt leerer, die abendlichen Fressfenster schrumpfen. Auch die Schattenwirkung der Vegetation strukturiert Jagdsituationen. Wo sie ausfällt, verlieren visuell jagende Arten ihre günstigen Kontraste – und müssen mehr Energie ins Suchen aufwenden.
Bezug: Ward 1989 The four-dimensional nature of lotic ecosystems · Strayer and Dudgeon 2010 Freshwater biodiversity conservation · Poff et al. 1997 The natural flow regime
Schneller, wärmer, ärmer an Sauerstoff
Begradigungen verschieben Temperaturdynamik und Gasaustausch – belastend für empfindliche Arten.
Temperatur ist ein Masterfaktor für Fische. Wo Ufergehölze fehlen und der Fluss tiefer in ein sonnenexponiertes Bett rutscht, heizt sich das Wasser im Sommer stärker auf. Gleichzeitig nimmt durch den geringeren Kontakt mit der Aue und den Kieskörpern der ausgleichende Untergrundstrom ab. Extreme werden häufiger: heißer im Sommer, kälter und weniger gepuffert im Winter.
Wärmeres Wasser bindet weniger Sauerstoff. In Abschnitten mit geringem Rauigkeitswiderstand ist der turbulente Gasaustausch nicht zwangsläufig hoch genug, um die steigende Nachfrage lebender Organismen zu kompensieren – zumal nachts, wenn Photosynthese fehlt. Empfindliche Arten geraten schneller in Stresszonen, in denen Stoffwechsel und Fortpflanzung leiden.
Diese Effekte variieren regional. In Gebirgsbächen kann starke Beschattung Wärme dämpfen, in Niederungen dominiert die Exposition. Klar ist jedoch: Je einförmiger das hydraulische Umfeld, desto geringer die Chance, dass Fische in Mikrohabitate mit passender Temperatur und ausreichendem Sauerstoff ausweichen können.
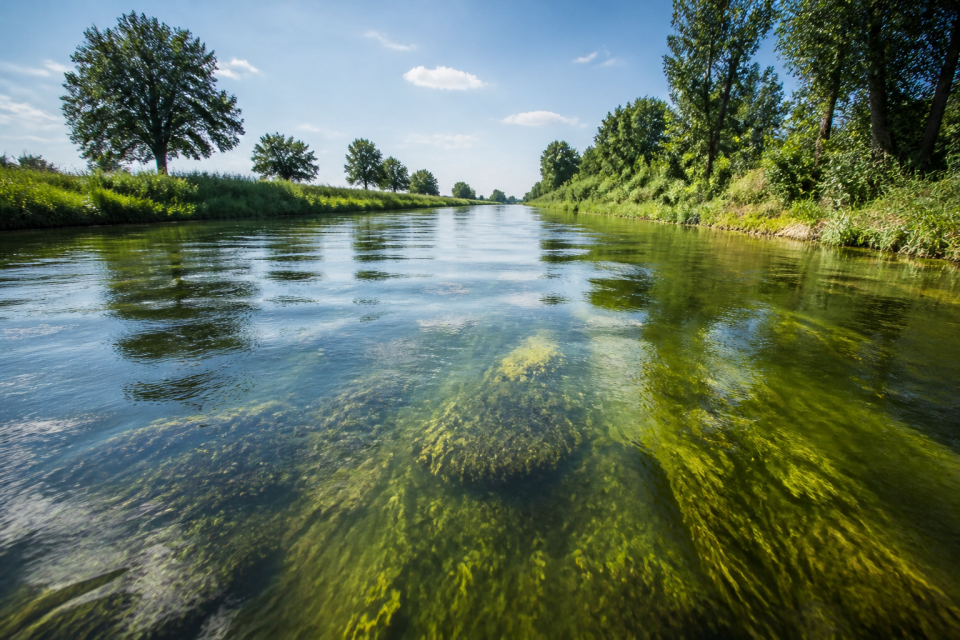
Eine zentrale Rolle spielt der hyporheische Austausch – der Zu- und Abfluss von Wasser durch den Kieskörper unter der Sohle. Er wirkt wie eine natürliche Klimaanlage: kühlend im Sommer, wärmend im Winter, zugleich filternd und sauerstoffliefernd, wenn das Wasser durch belüftete Kieslagen strömt. In begradigten, eingeschnittenen Rinnen verkleinert sich dieser Kontakt oft drastisch, weil die Sohle verfestigt und das Ufer entkoppelt ist. Dadurch verschwinden jene kalten Quellenfahnen und leicht überrieselten Flachwasserbereiche, in die sich Fische an Hitzetagen oder bei Sauerstoffmangel zurückziehen würden.
Hinzu kommt das Zusammenspiel aus Temperatur, Nährstoffen und Algenproduktion. Aufgewärmtes, langsam durchströmtes Wasser kann tagsüber sehr hohe Sauerstoffwerte erreichen und nachts umso tiefer fallen, sobald die Photosynthese stoppt – eine täglich pendelnde Belastung, die Jungfische besonders trifft. Wo die Strömung gleichförmig und die Beschattung schwach ist, fehlen lokale Gegenpole, die diese Pendelamplitude abschwächen. Deshalb zielen wirksame Maßnahmen nicht nur auf absolute Temperaturen, sondern auf ein vielfältiges thermisches Mosaik, das Fischen Wahlmöglichkeiten bietet.
Bezug: Poff et al. 1997 The natural flow regime · Poff et al. 2010 The ecological limits of hydrologic alteration ELOHA · Ward 1989 The four-dimensional nature of lotic ecosystems
Wenn Geschwindigkeit zur Wand wird
Auch ohne Großdämme können steile Durchlässe, Sohlabstürze und Hochwasserstraßen Fischen den Weg abschneiden.
Fischwanderungen scheitern nicht nur an hohen Betonmauern. In beschleunigten Flussabschnitten bilden sich hydraulische Barrieren: Strömungsfelder, die schneller sind, als Fische ausdauernd schwimmen können. Besonders in Engstellen, an Brückenfundamenten oder über glatten Abstürzen entstehen Wasserwände, die nur im kurzen Spurt zu überwinden sind – eine Fähigkeit, die vor allem große, trainierte Individuen mit gutem Timing besitzen.
Kritisch sind auch Durchlässe und Verrohrungen. Wo Röhren steil liegen, Einläufe frei im Wasser hängen oder der Auslauf als Stufe endet, werden sie zu Sackgassen. Für aufwärts wandernde Laichfische, aber auch für abwärts driftende Jungstadien bedeuten solche Strukturen Verluste: Die einen scheitern am Anstieg, die anderen prallen an Turbulenz und Scherkräften ab.
Die Summe vieler kleiner Hindernisse kann die genetische Durchmischung und die saisonalen Umlagerungen von Fischgemeinschaften genauso stark einschränken wie ein einzelner großer Damm. Begradigungen erhöhen die Wahrscheinlichkeit solcher Problemstellen, weil sie Gefälle bündeln und Querbauwerke zur Stabilisierung der Sohle nach sich ziehen.
Entscheidend ist nicht nur die maximale Geschwindigkeit, sondern die Verfügbarkeit von Rast- und Antrittsplätzen in passendem Abstand. Fische nutzen Grenzschichten entlang rauer Sohlen und Ufer, um Energie zu sparen und in Strömungsfenster einzuschwimmen. Glatte Betonröhren eliminieren diese Mikrostrukturen; schon moderate Abflüsse werden dann zur Wand. Umgekehrt können wenige Zentimeter Rauigkeit, kleine Beckenfolgen oder seitliche Kehrwasser den Unterschied ausmachen, ob ein Wanderfenster offen ist.
Wanderung abwärts wird häufig unterschätzt. Jungfische und Driftorganismen werden in Durchlässe und schmale Gerinnestrecken hineingezogen, wo sie auf hohe Scherkräfte, Düsenströmung und abrupte Stufen treffen. Verluste entstehen nicht nur durch direkte Mortalität, sondern auch durch Verdriftung in suboptimale Habitate. Die ökologische Wirkung eines Bauwerks hängt daher ebenso von seiner Einbindung in den Gewässerlauf und die Abflusssteuerung ab wie von seiner Bauform.
Kleine Barrieren entschärfen
- Gefälle glättenHarte Stufen in gleitende Riegel oder Sohlenrampen überführen – mit rauer Oberfläche und Tiefrinnen.
- Rastzonen schaffenPool-Riffle-Abfolgen oder kleine Becken einbauen, damit Fische Kraft sammeln können.
- Rauigkeit erhöhenLeitelemente, Baffles, Steine und Holz strukturieren die Strömung und bilden Grenzschichten.
- Ein- und Auslauf anpassenSchwellen bündig anschließen, Sprünge vermeiden, Sohle unterfüttern und Tiefe bereitstellen.
- Betrieb und ZeitfensterWanderperioden berücksichtigen, Abflüsse phasenweise reduzieren und Nebengerinne öffnen.
Bezug: Roni, Beechie, Pess, Hanson 2013 Stream and Watershed Restoration · Poff et al. 2010 The ecological limits of hydrologic alteration ELOHA
Beton, Blitzfluten und Spurenstoffe
Begradigung verstärkt im urbanen Raum den „Urban Stream Syndrome“ – mit Mehrfachstress für Fische.
In Städten kommt zur glatten Rinne der harte Einzugsbereich. Versiegelte Flächen leiten Regenwasser schlagartig in Kanäle, die Hydrographen werden spitz: Blitzfluten wechseln mit Niedrigwasser. In solchen Takten fehlt Zeit für biologische Prozesse. Feinmaterial wird von Straßen gespült und lagert sich in Strömungsschatten ab; gleichzeitig reißen Hochwasser frisch eingebrachte Strukturen wieder heraus.
Parallel laufen chemische Stressoren: Nährstoffe, Schwermetalle, Reifenabrieb, Biozide aus Gärten, Arzneimittelrückstände. Viele dieser Stoffe greifen in Sinnesleistungen, Hormonhaushalt oder Sauerstofftransport ein – subtil oder akut. In gleichförmigen Kanälen gibt es kaum Rückzugsräume, in denen Konzentrationen durch Verdünnung oder Rückhalt sinken.
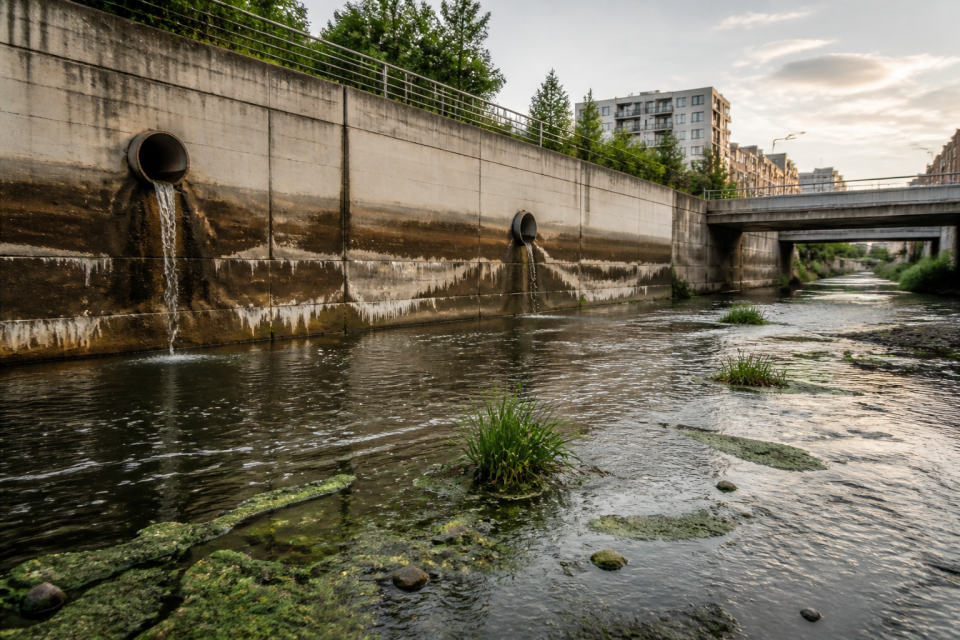
Fische tragen diese Lasten zeitgleich. Ihre Erfolgsaussichten steigen nur dort, wo der Fluss wieder mehr Verweildauer und Struktur erhält – damit sich Sedimente sortieren, Mikrohabitate entstehen und Schadstoffspitzen abgepuffert werden können.
Die Wechselwirkung der Stressoren erschwert eindeutige Zuschreibungen. Doch die Summe ist konsistent: Urban begradigte Flüsse liefern weniger stabile Nischen. Das erklärt, weshalb selbst robuste Arten immer wieder Jahrgänge mit schwacher Rekrutierung zeigen, obwohl Wasserqualitätsstandards formal eingehalten werden.
Bezug: Walsh et al. 2005 The urban stream syndrome · European Environment Agency 2018 European waters assessment
Generalisten bleiben, Spezialisten gehen
Wer Kies, Auen und Variabilität braucht, verschwindet zuerst – Toleranz und Flexibilität werden zum Wettbewerbsvorteil.
Nicht alle Fische reagieren gleich. Arten, die ihr Gelege in kiesigen Riffles belüften oder die Ruhezonen in Kolken und unter Wurzeln benötigen, verlieren in begradigten Abschnitten überproportional viel Habitat. Dazu zählen viele Salmoniden und lithophile Karpfenfische in Fließstrecken, aber auch Arten, die als Ansitzjäger auf strukturierte Kanten angewiesen sind. Wo die Aue selten überschwemmt wird, scheitern außerdem Laichstrategien, die auf flach überströmte Wiesen und Röhrichte setzen.
Gewinner sind häufig Generalisten mit breiter Toleranz gegenüber Temperatur, Trübung und Strömung – Arten, die im pelagialen Raum jagen, opportunistisch laichen oder auch in Vegetationslücken zurechtkommen. Sie profitieren von vereinfachten Nahrungsnetzen und der Abwesenheit sensibler Konkurrenz. Die Diversität der Lebensstrategien schrumpft, die funktionelle Redundanz nimmt ab: Störungen treffen die verbliebenen Arten härter.
Diese Muster sind über Regionen hinweg ähnlich, aber die Protagonisten wechseln. In Europa steht oft ein anderes Artenspektrum als in Nordamerika oder Asien im Fokus. Der Mechanismus bleibt vergleichbar: Wo Dynamik, Strukturvielfalt und Vernetzung fehlen, setzen sich tolerante, anpassungsfähige Fische durch – zulasten solcher, die ökologische Feinheiten brauchen.
Ein traits-basierter Blick macht diese Verschiebungen greifbar. Rheophile, lithophile und kälteaffine Strategen verlieren dort, wo Strömungsdiversität, Kiesporenfluss und Beschattung fehlen. Eurytope, omnivore und wärmetolerante Strategen gewinnen Terrain, wenn Abflussregime geglättet, Ufer vereinfacht und Auen abgekoppelt werden. Weil funktionelle Gruppen unterschiedlich auf Störungen reagieren, reduziert die Vereinheitlichung nicht nur Artenzahl, sondern auch die Pufferfähigkeit des Systems – ein Grund, warum Störereignisse nach Begradigungen länger nachwirken.
Bezug: Strayer and Dudgeon 2010 Freshwater biodiversity conservation · Poff et al. 1997 The natural flow regime
Wie Rinnen wieder zu Flüssen werden
Renaturierung wirkt, wenn sie Prozesse freisetzt: Raum geben, Auen anbinden, Struktur zulassen – und nachsteuern.
Flüsse werden nicht durch Dekoration lebendig, sondern durch Dynamik. Erfolgreiche Projekte beginnen mit der Frage nach Wasser- und Sedimentregime: Wie viel Raum und Rauigkeit braucht der Abschnitt, damit sich Riffles, Pools und Kiesbänke wieder selbst erhalten? Re-Mäandrierung verlängert den Lauf, senkt das Gefälle, schafft Gleithänge und Prallhänge. Auenanschlüsse geben Überflutungen einen Platz, in dem Energie sich abbauen und Nachwuchs aufwachsen kann.
Wo der Korridor eng bleibt, schafft eingebrachtes Totholz Strömungsvielfalt, Rückhalt und Deckung. Kiesaufhöhungen können temporär Laichplätze verbessern, wenn oberhalb die Geschiebelieferung fehlt. Entscheidend ist, die Mechanismen zu berücksichtigen: Holz will arbeiten, Kies will wandern, Wasser will Speicherräume. Bleibt alles fixiert, entsteht kein langlebiger Nutzen – die Strukturen altern und die Arten mit ihnen.
Monitoring und Nachsteuerung gehören dazu. Viele Systeme reagieren zeitverzögert; erst wenn Sedimentbudget, Vegetation und Strömung zusammenspielen, stabilisieren sich günstige Zustände. Das braucht Geduld, ein lernendes Management – und die Einsicht, dass Hochwasserschutz und Ökologie keine Gegensätze sein müssen, wenn Retentionsräume und Ausuferungsflächen gezielt geschaffen werden.
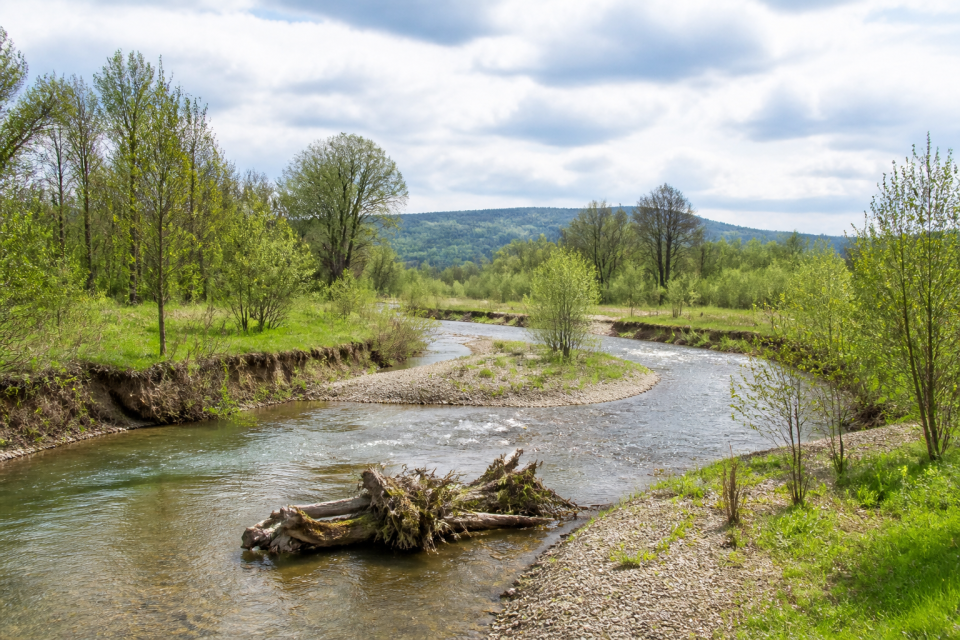
Praktisch heißt das auch: Ziele messbar machen. Erfolgreiche Projekte benennen Prozesse und Endpunkte – etwa die Wiederkehr einer Riffle-Pool-Sequenz, eine definierte Bandbreite der Sohldynamik, die Öffnung eines Nebengerinnes oder die Reduktion kleiner Barrieren im Takt der Wanderzeiten. Sie koppeln bauliche Schritte an das Einzugsgebiet: Erosion mindern, Feinsedimente zurückhalten, Abflussspitzen entschärfen. Und sie organisieren Pflege als Teil des Konzepts, nicht als spätere Last – denn Totholz wandert, Kies verlagert sich, Ufervegetation entwickelt sich in Phasen.
Grenzen sind real: Enge Korridore, Infrastrukturen am Ufer, verschmutzte Sedimente oder Nutzungsinteressen beschränken den Spielraum. Doch selbst dort lässt sich gewinnen, wenn Eingriffe prozessorientiert sind. Ein paar gut platzierte Totholzpakete, die Öffnung eines kurzen Seitengerinnes, eine rau gestaltete Niedrigwasserrinne oder ein entschärfter Durchlass können ein monotones Stück in eine Abfolge aus Mikrohabitaten verwandeln – und so die Kette vom Ei bis zum adulten Fisch wieder belastbarer machen.
- Re-Mäandrierung senkt das Gefälle und schafft natürliche Strukturwechsel.
- Auenanschluss erhöht Rückhalt, Kinderstubenfläche und Überlebensraten von Jungfischen.
- Totholz und variable Sohlhöhen liefern Strömungsvielfalt auch in engen Korridoren.
- Erfolg misst sich an Prozessen und Nachwuchs, nicht an Einzelsteinen oder Uferoptik.
Renaturierung in Etappen
- Regime verstehenAbfluss, Gefälle und Sedimenthaushalt analysieren – Engpässe und Spielräume kennen.
- Raum schaffenKorridor verbreitern, Lauf verlängern, Auenflächen sichern oder wiederherstellen.
- Struktur zulassenTotholz einbringen, Kies mobilisieren, starre Ufer lösen – natürliche Rauigkeit erhöhen.
- Durchgängigkeit sichernKleine Barrieren entschärfen, Nebengerinne öffnen, Sohlen gleiten statt stufen.
- Lernen und nachsteuernEntwicklung messen, Prozesse bewerten, Anpassungen schrittweise umsetzen.
Bezug: Palmer et al. 2005 Standards for ecologically successful river restoration · Bernhardt et al. 2005 Synthesizing U.S. river restoration efforts · Roni, Beechie, Pess, Hanson 2013 Stream and Watershed Restoration · Opperman et al. 2010 Ecological benefits of floodplains
Einordnung
Was sich daraus ableiten lässt
Begradigte Flüsse verlieren jene Vielfalt an Strömungen, Tiefen und seitlichen Verbindungen, die Fische für Laich, Aufwuchs, Nahrung und Wanderung brauchen. Das ist kein kosmetisches, sondern ein Prozessproblem: Verkürzter Lauf und harte Ufer beschleunigen das Wasser, räumen Sedimente aus, trennen die Aue ab und glätten die Nahrungsketten. Die Folgen sind vorhersehbar – weniger Kinderstuben, weniger Futterhotspots, mehr Barrieren – und sie treffen zuerst die Arten, die auf Kies, Kraut und Variabilität angewiesen sind. Umkehr gelingt dort, wo Renaturierung Raum und Rauigkeit schafft, den Fluss wieder mit seiner Aue verbindet und Durchgängigkeit auch im Kleinen denkt. Dann übernimmt das System wieder selbst die Arbeit: Es baut Kolke, Kiesbänke und Rückzugsräume, die Jahr für Jahr neu entstehen und altern. In solchen Flüssen finden Fische dauerhaft Optionen – und Menschen verlässlicheren Hochwasserschutz, weil Energie im Raum verteilt statt im Kanal beschleunigt wird.
Weitergedacht
Wie erkenne ich einen ökologisch verarmten, begradigten Abschnitt vor Ort?
Anmerkbare Hinweise sind ein geradliniger Verlauf, trapezförmige Querschnitte mit Riprap, gleichförmige Strömung, spärliche Unterwasservegetation, fehlende Nebengerinne und hohe Ufer ohne Überflutungsspuren. Oft fehlen Kolke, Rauschen und Kiesbänke. Die Fischfauna wird von wenigen, robusten Arten dominiert.
Hilft Totholz wirklich – oder macht es nur Hochwasser gefährlicher?
Sinnvoll platziertes, standsicher eingebrachtes Totholz erhöht Strömungsvielfalt, Rückhalt und Deckung. In engen, hochwassergefährdeten Abschnitten muss die Lage hydrodynamisch geprüft werden, etwa durch Verankerung oder Wahl von Bereichen mit ausreichendem Querschnitt. In breiteren Korridoren und mit Auenanschluss wirkt Holz in der Regel ökologisch positiv und hydraulisch dämpfend.
Kann Hochwasserschutz mit fischfreundlicher Renaturierung zusammengehen?
Ja. Rückhalteräume, Deichrückverlegungen, Auenanschluss und Re-Mäandrierung senken Scheitelabflüsse, verlängern Laufzeiten und schaffen gleichzeitig Kinderstuben und Habitate. Technische Bauwerke bleiben nötig, doch je mehr Retentionsvolumen und Rauigkeit das System bietet, desto besser lassen sich Sicherheit und Ökologie gemeinsam erreichen.
Quellen & Einordnung
Dieser Artikel wurde KI-gestützt erstellt. Quellenangaben allein sind kein Nachweis einer unabhängigen Faktenprüfung. KI-Bilder illustrieren das Thema; sie dokumentieren keine reale Beobachtung.
- Ward 1989 The four-dimensional nature of lotic ecosystemsJournal of the North American Benthological SocietyKI-Quellenhinweis · nicht unabhängig geprüft
Klassischer Aufsatz zur Längs-, Quer-, Vertikal- und Zeitdimension von Fließgewässern.
- Poff et al. 1997 The natural flow regimeBioScienceKI-Quellenhinweis · nicht unabhängig geprüft
Grundlage zum Konzept des natürlichen Abflussregimes und seiner ökologischen Bedeutung.
- Junk, Bayley, Sparks 1989 The flood pulse conceptCanadian Special Publication of Fisheries and Aquatic SciencesKI-Quellenhinweis · nicht unabhängig geprüft
Prägt das Verständnis für die ökologische Bedeutung periodischer Auenüberflutungen.
- Leopold, Wolman, Miller 1964 Fluvial Processes in GeomorphologyW. H. FreemanKI-Quellenhinweis · nicht unabhängig geprüft
Standardwerk zu Geomorphologie und Prozessverständnis in Flüssen.
- Walsh et al. 2005 The urban stream syndromeJournal of the North American Benthological SocietyKI-Quellenhinweis · nicht unabhängig geprüft
Beschreibt typische hydrologische und biologische Muster urbaner Gewässer.
- Bernhardt et al. 2005 Synthesizing U.S. river restoration effortsScienceKI-Quellenhinweis · nicht unabhängig geprüft
Bilanz vieler Renaturierungsprojekte und Plädoyer für prozessorientierte Ansätze.
- Palmer et al. 2005 Standards for ecologically successful river restorationJournal of Applied EcologyKI-Quellenhinweis · nicht unabhängig geprüft
Leitlinien, wie Erfolg in der Flussrenaturierung definiert und gemessen werden kann.
- Roni, Beechie, Pess, Hanson 2013 Stream and Watershed RestorationWiley-BlackwellKI-Quellenhinweis · nicht unabhängig geprüft
Praxisnahe Zusammenstellung wirksamer Maßnahmen in Fließgewässern und Einzugsgebieten.
- Strayer and Dudgeon 2010 Freshwater biodiversity conservationJournal of the North American Benthological SocietyKI-Quellenhinweis · nicht unabhängig geprüft
Überblick zu Mustern und Treibern des Verlusts von Süßwasserbiodiversität.
- European Environment Agency 2018 European waters assessmentEEAKI-Quellenhinweis · nicht unabhängig geprüft
Bericht zur Lage der Gewässer in Europa, inklusive hydromorphologischer Belastungen.
- Opperman et al. 2010 Ecological benefits of floodplainsBioScienceKI-Quellenhinweis · nicht unabhängig geprüft
Zusammenfassung der ökologischen Leistungen intakter Überschwemmungsflächen.
- Poff et al. 2010 The ecological limits of hydrologic alteration ELOHAFreshwater BiologyKI-Quellenhinweis · nicht unabhängig geprüft
Rahmen zur Ableitung ökologischer Abflussziele bei veränderten Regimen.